Tác giả: Bác sĩ Hoàng Sầm – sinh hóa và dược lý phân tử; chuyển trọng tâm từ việc tìm chất hạ acid uric sang nhận diện những đích phân tử có khả năng điều hòa sinh tổng hợp purine.
Bệnh gout từ lâu được tiếp cận thông qua kiểm soát acid uric. Nghiên cứu này hướng sâu vào các gene, enzyme và cơ chế phản hồi quyết định quá trình sinh tổng hợp purine nội sinh.
1. Bệnh gout và câu hỏi về nguồn gốc của purine nội sinh
Bệnh gout là hậu quả của sự lắng đọng tinh thể monosodium urate trong các mô, đặc biệt tại khớp và tổ chức quanh khớp. Sự hình thành tinh thể phụ thuộc vào tình trạng quá bão hòa urate, trong khi nồng độ urate của cơ thể lại được quyết định bởi sự cân bằng giữa sản xuất và đào thải. Trong thực hành lâm sàng, kiểm soát acid uric máu là nền tảng điều trị, nhưng xét về sinh hóa, acid uric chỉ là sản phẩm cuối của một hệ thống chuyển hóa phức tạp hơn nhiều. Muốn tìm hiểu tận gốc sự gia tăng sản xuất acid uric, cần khảo sát những phản ứng hình thành nucleotide purine ngay từ thượng nguồn, nơi tế bào sử dụng các chất chuyển hóa cơ bản để tổng hợp adenine và guanine phục vụ hoạt động sống.
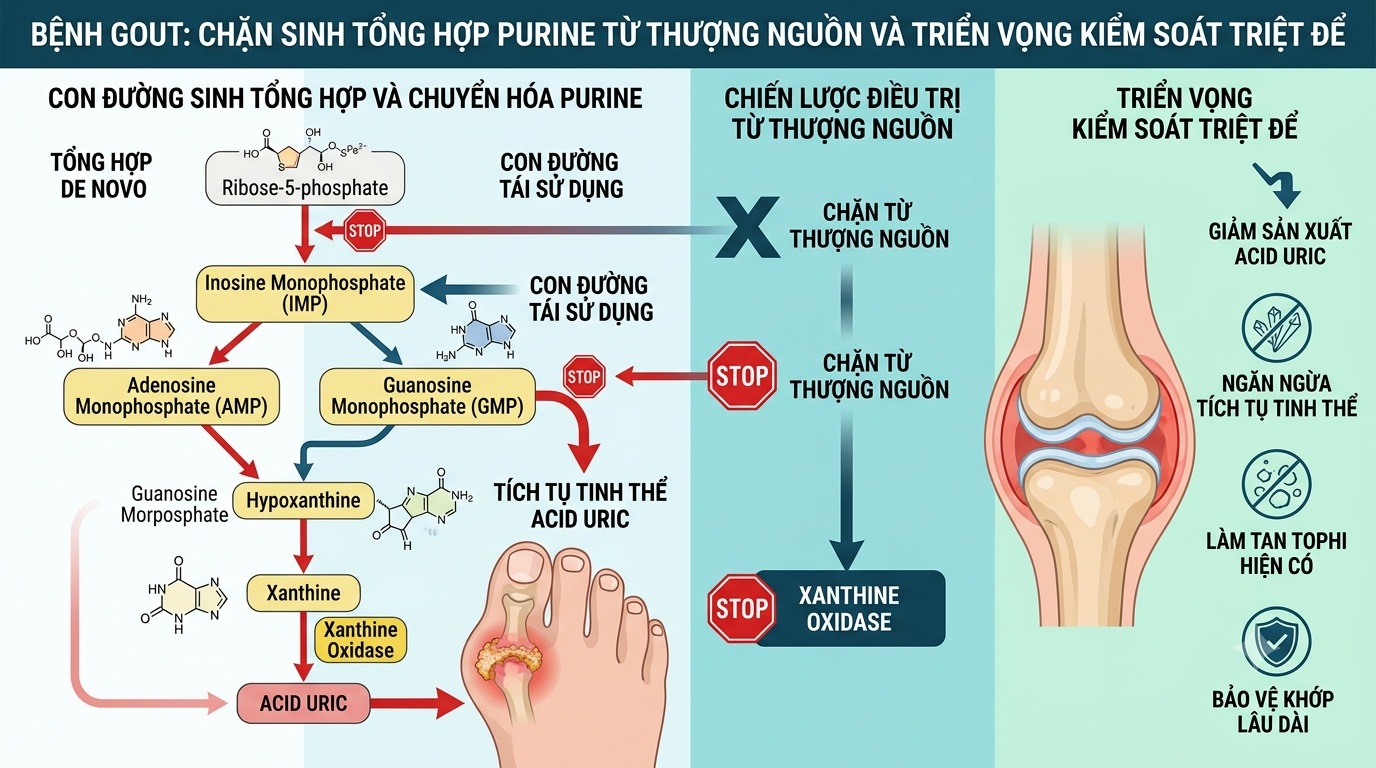
Purine trong cơ thể có hai nguồn chính: purine từ thực phẩm và purine nội sinh. Purine nội sinh được tạo thành thông qua quá trình tổng hợp mới, gọi là de novo purine biosynthesis, đồng thời được duy trì bằng con đường tái sử dụng các base purine có sẵn. Hai quá trình này liên hệ chặt chẽ với nhau, bảo đảm tế bào có đủ nucleotide để tổng hợp DNA, RNA, dự trữ năng lượng và thực hiện các chức năng chuyển hóa. Khi nucleotide purine bị thoái hóa, những sản phẩm trung gian tiếp tục chuyển thành hypoxanthine, xanthine và cuối cùng là acid uric. Như vậy, acid uric tăng có thể bắt nguồn từ sự gia tăng lượng purine được tổng hợp, tăng thoái hóa nucleotide hoặc suy giảm khả năng đào thải. Trong số các cơ chế ấy, tăng sinh tổng hợp purine nội sinh là một hướng nghiên cứu đặc biệt đáng quan tâm vì nó xảy ra trước khi sản phẩm cuối được hình thành.
Điều cần nghiên cứu không phải tìm cách làm cơ thể ngừng tổng hợp purine, bởi nucleotide purine là thành phần thiết yếu của sự sống. Vấn đề là xác định những điều kiện khiến quá trình tổng hợp vượt quá nhu cầu sinh lý và tìm khả năng điều hòa nó trở lại trạng thái cân bằng. Đây là sự khác biệt căn bản giữa ức chế một phản ứng chuyển hóa và kiểm soát một hệ thống chuyển hóa. Trong những trường hợp có rối loạn enzyme đầu nguồn, sự điều hòa phù hợp có thể làm giảm lượng purine dư thừa được tạo ra, từ đó hạn chế nguồn cơ chất có khả năng bị thoái hóa thành acid uric.
2. Vì sao đàn ông mắc gout nhiều hơn phụ nữ và tinh hoàn có vai trò gì?
Từ thời Hippocrates, người ta đã nhận thấy bệnh gout xuất hiện chủ yếu ở nam giới trưởng thành, ít gặp ở phụ nữ trước mãn kinh và có những khác biệt đáng chú ý liên quan đến trạng thái sinh dục. Những quan sát cổ đại ấy cho thấy mối liên hệ giữa hoạt động sinh sản và chuyển hóa urate đã được con người chú ý từ rất sớm. Tuy nhiên, dịch tễ học hiện đại xác định gout không phải bệnh riêng của đàn ông. Theo nghiên cứu Gánh nặng bệnh tật toàn cầu công bố năm 2024, tỷ lệ hiện mắc gout chuẩn hóa theo tuổi ở nam giới cao gấp khoảng 3,26 lần nữ giới. Sự khác biệt này thay đổi theo tuổi, tình trạng mãn kinh, yếu tố di truyền, chức năng thận và đặc điểm chuyển hóa của từng quần thể. Bởi vậy, quan niệm phụ nữ chỉ chiếm 6% tổng số bệnh nhân gout không thể áp dụng chung cho mọi dân số.
Sự khác biệt giữa hai giới trước hết liên quan đến nội tiết sinh dục. Estrogen có ảnh hưởng đến quá trình vận chuyển và đào thải urate, góp phần giải thích vì sao phụ nữ trước mãn kinh thường có nồng độ urate thấp hơn nam giới. Khi estrogen suy giảm sau mãn kinh, nồng độ urate và nguy cơ gout có xu hướng tăng. Testosterone và những thay đổi của hệ nội tiết nam cũng liên quan đến chuyển hóa urate, nhưng mối quan hệ này không đơn giản chỉ là testosterone càng cao thì gout càng nhiều. Những yếu tố chuyển hóa khác như khối lượng cơ, chức năng thận, béo phì, lượng rượu tiêu thụ và sự khác biệt trong biểu hiện các protein vận chuyển urate cũng góp phần tạo nên chênh lệch nguy cơ giữa nam và nữ.
Điểm đáng chú ý nằm ở chỗ tinh hoàn không chỉ là cơ quan nội tiết mà còn có hoạt động tổng hợp nucleotide rất mạnh để phục vụ quá trình sinh tinh. Tế bào sinh tinh phải trải qua những giai đoạn phân chia, giảm phân và biệt hóa liên tục, đòi hỏi nguồn nucleotide đáp ứng nhu cầu hình thành vật chất di truyền. Chính tại đây, một dạng enzyme đặc hiệu tinh hoàn đã được xác định: phosphoribosyl pyrophosphate synthetase 3, gọi tắt là PRPS3, được mã hóa bởi gene PRPS1L1. Enzyme này xúc tác quá trình tạo phosphoribosyl pyrophosphate, một chất trung gian quan trọng trong sinh tổng hợp nucleotide. Khác với PRPS1 và PRPS2 được biểu hiện ở nhiều mô, PRPS3 có biểu hiện đặc hiệu nổi bật tại tinh hoàn. Sự phân bố ấy đặt ra một câu hỏi khoa học đáng nghiên cứu: liệu hoạt động tổng hợp phosphoribosyl pyrophosphate tại tinh hoàn có đóng góp đáng kể vào tổng lượng purine nội sinh và sự khác biệt chuyển hóa urate giữa hai giới hay không?
Năm 2018, Wang và cộng sự công bố nghiên cứu bất hoạt gene Prps1l1 ở chuột bằng công nghệ chỉnh sửa gene. Kết quả cho thấy chuột đực vẫn duy trì khả năng sinh sản, số lượng tinh trùng, hình thái và khả năng vận động tinh trùng không thay đổi đáng kể so với nhóm đối chứng. Phát hiện này cho thấy PRPS3 không phải yếu tố bắt buộc duy nhất đối với quá trình sinh tinh trong mô hình được khảo sát. Tuy nhiên, nghiên cứu chưa đo đầy đủ testosterone, ham muốn tình dục, chức năng giao phối hoặc lượng urate được sản xuất. Vì vậy, có cơ sở để nghiên cứu khả năng giảm hoạt tính PRPS3 mà vẫn bảo tồn sinh tinh, nhưng chưa thể kết luận việc bất hoạt enzyme hoàn toàn không ảnh hưởng đến năng lực tình dục ở người.
Điều đáng quan tâm hơn là nếu PRPS3 bị bất hoạt mà lượng purine được tổng hợp tại tinh hoàn vẫn không thay đổi, điều đó sẽ gợi ý sự bù trừ của những isoenzyme khác. Ngược lại, nếu tốc độ tổng hợp purine giảm rõ rệt, cần tiếp tục xác định mức đóng góp của thay đổi ấy vào tổng lượng urate toàn thân. Đây là mắt xích quyết định để đánh giá PRPS3 có thực sự là đích điều trị gout hay chỉ là một enzyme đặc hiệu mô có chức năng chuyển hóa tại chỗ.
3. PRPS1 và PRPS3: Hai vị trí đầu nguồn của quá trình tổng hợp purine
Muốn hiểu khả năng kiểm soát purine từ thượng nguồn, trước hết cần xem xét quá trình hình thành phosphoribosyl pyrophosphate. Trong tế bào, glucose được chuyển hóa qua con đường pentose phosphate để tạo ribose-5-phosphate. Dưới tác động của các enzyme phosphoribosyl pyrophosphate synthetase, ribose-5-phosphate tiếp nhận nhóm pyrophosphate từ adenosine triphosphate để hình thành phosphoribosyl pyrophosphate, đồng thời giải phóng adenosine monophosphate. Phản ứng này cung cấp một chất trung gian thiết yếu cho cả quá trình tổng hợp nucleotide mới và tái sử dụng các base purine. Tốc độ phản ứng phụ thuộc vào lượng cơ chất, trạng thái năng lượng, phosphate vô cơ, ion magnesium và những cơ chế điều hòa enzyme.
Trong họ enzyme này, PRPS1 có ý nghĩa bệnh sinh trực tiếp đối với gout. Những biến thể tăng chức năng của gene PRPS1 đã được chứng minh có thể khiến enzyme hoạt động quá mức hoặc giảm nhạy cảm với cơ chế ức chế ngược. Khi đó, lượng phosphoribosyl pyrophosphate tăng, thúc đẩy dòng tổng hợp purine mới, dẫn đến tăng sản xuất acid uric và có thể gây gout hoặc sỏi uric. Đây là một trong những bằng chứng sinh học quan trọng nhất cho thấy rối loạn enzyme đầu nguồn thực sự có khả năng gây bệnh, chứ không chỉ là một giả thuyết suy diễn từ sơ đồ chuyển hóa.
Sự khác biệt giữa PRPS1 và PRPS3 cần được xem xét trên cả phương diện phân bố mô và chức năng. PRPS1 hiện diện tại nhiều cơ quan, tham gia duy trì nguồn nucleotide thiết yếu cho hoạt động sống. PRPS3 có biểu hiện đặc hiệu tại tinh hoàn, nơi nhu cầu tổng hợp nucleotide gắn với sinh tinh. Bởi vậy, ức chế PRPS1 có thể tác động đến chuyển hóa nucleotide trên phạm vi rộng, trong khi ức chế chọn lọc PRPS3 có khả năng tạo ra tác động đặc hiệu mô hơn. Tuy nhiên, tính đặc hiệu mô không đồng nghĩa với khả năng kiểm soát urate toàn thân. Muốn khẳng định điều đó phải định lượng được dòng tổng hợp purine do PRPS3 đóng góp và khả năng bù trừ của PRPS1 cùng PRPS2.
Đối với PRPS1, đích điều hòa thích hợp là giảm hoạt tính quá mức về gần trạng thái sinh lý, đặc biệt trong những trường hợp có bất thường điều hòa enzyme. Việc bất hoạt hoàn toàn gene này có thể gây thiếu hụt nucleotide và những rối loạn nghiêm trọng, trong đó có tổn thương thần kinh. Đối với PRPS3, cần đánh giá khả năng giảm biểu hiện gene PRPS1L1 hoặc ức chế chọn lọc enzyme, đồng thời theo dõi chức năng sinh tinh, nội tiết sinh dục và chuyển hóa purine. Như vậy, hai enzyme cùng tham gia tạo nguyên liệu đầu nguồn nhưng cần hai chiến lược nghiên cứu khác nhau. Một bên có bằng chứng gây gout khi tăng hoạt tính; bên còn lại có ưu thế đặc hiệu tinh hoàn nhưng vai trò đối với gout chưa được xác lập.
4. PPAT: Enzyme quyết định bước cam kết đầu tiên của sinh tổng hợp purine mới
Phosphoribosyl pyrophosphate được tạo thành bởi hệ enzyme PRPS không chỉ phục vụ tổng hợp purine mà còn tham gia tổng hợp pyrimidine, một số cofactor và quá trình tái sử dụng nucleotide. Vì vậy, muốn kiểm soát riêng con đường tổng hợp purine mới, cần khảo sát một enzyme nằm ngay sau bước hình thành nguyên liệu. Enzyme đó là phosphoribosyl pyrophosphate amidotransferase, gọi tắt là PPAT, xúc tác phản ứng sử dụng glutamine để chuyển nhóm amin vào phosphoribosyl pyrophosphate, tạo 5-phosphoribosylamine. Đây là bước cam kết đầu tiên đưa nguyên liệu vào quá trình sinh tổng hợp purine mới. Sản phẩm tiếp tục trải qua nhiều phản ứng để hình thành inosine monophosphate, tiền chất chung của các nucleotide adenine và guanine.
PPAT là một điểm điều hòa quan trọng vì hoạt tính của nó quyết định phần nào lượng phosphoribosyl pyrophosphate được đưa vào con đường tổng hợp purine. Khi hoạt động của PPAT tăng, trong điều kiện đủ cơ chất và những enzyme tiếp theo, dòng tổng hợp purine mới có thể gia tăng. Khi PPAT bị ức chế, tốc độ tạo các tiền chất purine có thể giảm. Tuy nhiên, cơ thể vẫn cần nguồn nucleotide phục vụ hoạt động sinh lý, vì vậy việc ức chế enzyme phải được kiểm soát về mức độ và tính chọn lọc. Nếu ức chế quá mạnh, tế bào có thể thiếu nucleotide để tổng hợp DNA, RNA và duy trì hoạt động sống, đặc biệt tại các mô có tốc độ tăng sinh cao.
Một đặc điểm đáng chú ý của PPAT là khả năng điều hòa thông qua cơ chế phản hồi từ các nucleotide purine đã được tổng hợp. Khi tế bào có đủ purine, quá trình tổng hợp mới cần được hạn chế để tránh tiêu hao năng lượng và nguyên liệu không cần thiết. Ngược lại, khi lượng purine giảm hoặc nhu cầu tăng, hoạt tính của hệ thống có thể được điều chỉnh theo hướng đáp ứng nhu cầu sinh lý. Đây là nguyên lý cân bằng chuyển hóa, trong đó sản phẩm của một con đường góp phần điều hòa chính quá trình tạo ra nó.
Nếu xem PRPS1 và PRPS3 là những enzyme tạo nguồn nguyên liệu thì PPAT chính là một cửa kiểm soát quan trọng quyết định nguyên liệu ấy đi vào tổng hợp purine mới. Đối với nghiên cứu gout, điều hòa PPAT có thể tạo ra tác động gần hơn với mục tiêu hạn chế sinh tổng hợp purine dư thừa. Tuy nhiên, sự giảm hoạt tính PPAT chưa chắc làm giảm tương ứng lượng acid uric, bởi tế bào có thể thay đổi con đường tái sử dụng purine hoặc điều chỉnh sự thoái hóa nucleotide. Chính vì vậy, hiệu quả phải được xác định bằng tốc độ tổng hợp purine thực tế và những biến động chuyển hóa toàn hệ thống.
5. Phát hiện mới về NUDT5: Cơ chế tự kìm hãm sinh tổng hợp purine
Năm 2025, những nghiên cứu đăng trên Science và Nature Metabolism đã làm rõ vai trò của protein Nudix hydrolase 5, gọi tắt là NUDT5, trong điều hòa quá trình sinh tổng hợp purine mới. Trước đây, NUDT5 chủ yếu được nghiên cứu như một enzyme thủy phân nucleotide. Tuy nhiên, các công trình mới cho thấy protein này còn có khả năng liên kết trực tiếp với PPAT, thúc đẩy sự hình thành những trạng thái tập hợp protein có hoạt tính thấp và làm giảm dòng tổng hợp purine. Đáng chú ý, chức năng điều hòa PPAT không phụ thuộc vào hoạt tính thủy phân nucleotide thông thường của NUDT5. Phát hiện này chứng minh một protein có thể tham gia điều hòa chuyển hóa không chỉ bằng phản ứng xúc tác mà còn bằng khả năng tương tác và làm thay đổi trạng thái hoạt động của protein khác.
Đến ngày 15/7/2026, công trình Metabolite glues as a means of purine sensing and chemotherapeutic response, đăng trên Nature, tiếp tục giải thích cơ chế này ở cấp độ cấu trúc phân tử. Các tác giả xác định rằng một số nucleotide purine nội sinh có thể đóng vai trò như những phân tử kết dính, làm ổn định tương tác giữa NUDT5 và PPAT. Khi adenosine monophosphate hiện diện, phân tử này có thể nằm tại vùng tiếp xúc giữa hai protein, tạo điều kiện tăng độ bền liên kết và duy trì PPAT trong trạng thái hoạt tính thấp. Nghiên cứu cũng ghi nhận guanosine monophosphate và inosine monophosphate có khả năng tham gia cơ chế điều hòa tương tự. Đặc biệt, sự hiện diện của NUDT5 làm tăng khoảng 50 lần hiệu lực ức chế PPAT của adenosine monophosphate trong hệ thực nghiệm được khảo sát.
Cơ chế này có ý nghĩa sinh lý sâu sắc. Khi nucleotide purine đã có đủ, tế bào có thể sử dụng chính những sản phẩm chuyển hóa ấy để tăng cường liên kết NUDT5–PPAT, qua đó hạn chế tổng hợp purine mới. Như vậy, tế bào có một hệ thống tự điều hòa, trong đó sự gia tăng sản phẩm giúp kìm hãm quá trình tạo thêm sản phẩm. Điều này mở ra một hướng nghiên cứu dược lý khác với ức chế enzyme thông thường: tìm những phân tử có khả năng tăng cường hoặc ổn định sự liên kết giữa hai protein, thay vì trực tiếp phá hủy enzyme hay ngăn chặn hoàn toàn sự biểu hiện của gene.
Nếu phát hiện được một hoạt chất thiên nhiên có khả năng ổn định phức hợp NUDT5–PPAT, chất đó có thể tham gia hạn chế dòng sinh tổng hợp purine mới. Tuy nhiên, để chứng minh cơ chế, cần xác định hợp chất thực sự làm tăng độ bền liên kết giữa hai protein, làm giảm hoạt tính PPAT trong điều kiện có NUDT5 và giảm tốc độ hình thành nucleotide purine mới trong tế bào. Khả năng gắn riêng với NUDT5 hoặc PPAT chưa đủ để khẳng định tác dụng mong muốn, bởi một chất gắn vào protein có thể làm tăng, giảm hoặc không làm thay đổi chức năng điều hòa của protein ấy.
Đây là hướng nghiên cứu đáng chú ý nhất trong những phát hiện phân tử gần đây. Chúng ta không chỉ có thêm một đích ức chế mà còn hiểu được một cơ chế tự kiểm soát của tế bào, từ đó có thể tìm những hoạt chất tác động vào chính cơ chế ấy.
6. Pallidifloside D: Hoạt chất có bằng chứng thực nghiệm gần nhất với mục tiêu đầu nguồn
Trong nhóm hoạt chất thiên nhiên được lựa chọn, Pallidifloside D là chất có bằng chứng thực nghiệm đáng chú ý nhất đối với điều hòa biểu hiện enzyme đầu nguồn. Đây là một saponin glycoside được phân lập từ Smilax sp. Năm 2016, Li và cộng sự công bố nghiên cứu trên tạp chí Fitoterapia, khảo sát tác động của Pallidifloside D khi phối hợp với allopurinol và những thay đổi liên quan đến chuyển hóa purine. Trong mô hình tế bào PC12, nhóm phối hợp ghi nhận sự giảm biểu hiện RNA thông tin của hệ enzyme tổng hợp phosphoribosyl pyrophosphate và enzyme amidotransferase tham gia tổng hợp purine mới, đồng thời tăng biểu hiện enzyme tham gia tái sử dụng các base purine. Những thay đổi này có ý nghĩa thống kê khi so sánh với nhóm chỉ sử dụng allopurinol.
Điểm quan trọng đối với hướng nghiên cứu hiện tại là sự thay đổi biểu hiện của hai nhóm enzyme nằm gần đầu con đường tổng hợp purine. Nếu Pallidifloside D có khả năng làm giảm biểu hiện PRPS và PPAT trong những điều kiện thích hợp, nó có thể ảnh hưởng đồng thời đến việc hình thành phosphoribosyl pyrophosphate và quá trình đưa nguyên liệu ấy vào sinh tổng hợp purine mới. Đây là một cơ chế đáng nghiên cứu vì tác động xảy ra trước khi nucleotide purine được tạo thành. Tuy nhiên, công trình năm 2016 chưa chứng minh hoạt chất này ức chế trực tiếp PRPS3, chưa tách biệt tác động lên PRPS1 với các isoenzyme khác và chưa xác định đầy đủ hiệu quả độc lập của Pallidifloside D đối với dòng tổng hợp purine.
Như vậy, Pallidifloside D cần được tiếp tục nghiên cứu ở ba cấp độ: biểu hiện gene, lượng protein enzyme và hoạt tính chuyển hóa thực tế. Trước hết cần xác định khả năng làm giảm biểu hiện PRPS1L1, PRPS1 và PPAT khi sử dụng hoạt chất riêng biệt. Sau đó phải kiểm tra lượng protein tương ứng, bởi sự giảm RNA thông tin chưa chắc dẫn đến giảm protein. Cuối cùng, cần sử dụng các phương pháp đánh dấu đồng vị để xác định tốc độ tổng hợp purine mới có thực sự giảm hay không. Nếu ba cấp độ này cùng cho kết quả phù hợp, chúng ta sẽ có cơ sở vững chắc hơn để đánh giá Pallidifloside D như một chất điều hòa sinh tổng hợp purine từ thượng nguồn.
7. Oxyresveratrol, Mulberroside A và triển vọng điều hòa enzyme tổng hợp purine
Oxyresveratrol là một hợp chất polyphenol thuộc nhóm stilbenoid, có cấu trúc gồm hai vòng thơm liên kết qua cầu ethylene và mang nhiều nhóm hydroxyl. Mulberroside A là dạng glycoside của oxyresveratrol, trong đó các đơn vị đường làm thay đổi tính chất hòa tan, hấp thu và chuyển hóa. Hai hợp chất này có quan hệ hóa học gần gũi nhưng có thể biểu hiện dược động học khác nhau. Sau khi đi vào cơ thể, Mulberroside A có thể trải qua quá trình thủy phân hoặc chuyển hóa, từ đó hình thành oxyresveratrol và những chất chuyển hóa liên quan. Điều này đặt ra yêu cầu nghiên cứu cả hoạt chất ban đầu và những chất chuyển hóa có khả năng tiếp cận enzyme nội bào.
Đối với mục tiêu kiểm soát sinh tổng hợp purine, Oxyresveratrol và Mulberroside A cần được khảo sát về khả năng điều hòa biểu hiện PRPS1 và PPAT, đồng thời đánh giá tác động lên tương tác NUDT5–PPAT. Cấu trúc polyphenol với nhiều nhóm hydroxyl cho phép những hợp chất này hình thành liên kết hydro và tương tác với các vùng protein phù hợp, nhưng đặc điểm cấu trúc ấy chỉ tạo cơ sở cho việc xây dựng giả thuyết, chưa đủ chứng minh hoạt tính tại đích. Hiện chưa có bằng chứng thực nghiệm trực tiếp được xác minh cho thấy hai chất này làm giảm biểu hiện PRPS1 hoặc PPAT, cũng chưa có công trình chứng minh chúng tăng cường liên kết NUDT5–PPAT.
Giá trị nghiên cứu của hai hợp chất nằm ở mối quan hệ giữa cấu trúc hóa học, chuyển hóa và khả năng tiếp cận đích phân tử. Nếu Oxyresveratrol có tác dụng trong khi Mulberroside A không có, cần xem xét vai trò của những nhóm đường đối với khả năng gắn protein hoặc xâm nhập tế bào. Nếu cả hai có tác dụng nhưng mức độ khác nhau, có thể nghiên cứu tương quan giữa cấu trúc, độ hòa tan, dược động học và hoạt tính enzyme. Những kết quả này sẽ giúp xác định liệu nhóm stilbenoid có chứa những cấu trúc thích hợp để phát triển chất điều hòa sinh tổng hợp purine hay không.
8. Morin, Moracin M, Kuwanon G và Mulberrofuran G: Bốn cấu trúc phân tử cần khảo sát
Morin thuộc nhóm flavonol, có cấu trúc gần với quercetin nhưng khác vị trí phân bố các nhóm hydroxyl trên vòng thơm. Sự khác biệt này có thể làm thay đổi cách phân tử tiếp xúc với protein, hình thành liên kết hydro và tương tác với những vùng điều hòa enzyme. Moracin M thuộc nhóm 2-arylbenzofuran, có hệ vòng dị hợp tạo nên hình dạng không gian khác biệt so với flavonol thông thường. Kuwanon G là hợp chất flavonoid prenyl hóa có cấu trúc phức tạp, trong khi Mulberrofuran G thuộc nhóm hợp chất polyphenol kiểu cộng hợp Diels–Alder. Bốn chất đại diện cho những khung cấu trúc hóa học khác nhau, vì vậy có giá trị trong chương trình khảo sát tương quan cấu trúc – hoạt tính đối với các protein điều hòa sinh tổng hợp purine.
Trong nghiên cứu thực vật tại Việt Nam, Bùi Thị Minh Nguyệt và Trần Huỳnh Nguyên Khanh đã công bố năm 2016 việc phân lập Moracin M, Kuwanon G và Mulberrofuran G từ cành Morus alba thu hái tại Đồng Tháp. Công trình này cung cấp cơ sở thực vật học và hóa học để khảo sát những hợp chất có nguồn nguyên liệu trong nước. Tuy nhiên, kết quả phân lập và định danh chưa phải bằng chứng về tác dụng trên gene PRPS hoặc phức hợp NUDT5–PPAT.
Đối với Morin, cần khảo sát khả năng gắn với vùng điều hòa của PPAT và bề mặt tiếp xúc NUDT5–PPAT. Với Moracin M, Kuwanon G và Mulberrofuran G, cần xác định những tương tác phân tử có thể xuất hiện tại vùng liên kết giữa hai protein. Do cấu trúc các hợp chất này khác nhau đáng kể, khả năng tiếp cận vùng liên kết, độ ổn định tương tác và tính chọn lọc có thể khác nhau. Đặc biệt, các hợp chất polyphenol phức tạp có thể gây ức chế enzyme không đặc hiệu hoặc kết tập trong môi trường thử nghiệm, vì vậy cần kiểm soát những hiện tượng này để tránh đánh giá sai kết quả.
Đến thời điểm rà soát, chưa xác minh được công bố thực nghiệm trực tiếp chứng minh một trong bốn hợp chất trên làm ổn định phức hợp NUDT5–PPAT. Bởi vậy, chúng được lựa chọn làm đối tượng sàng lọc dựa trên sự đa dạng cấu trúc, khả năng tiếp cận nguyên liệu và cơ sở hóa học đã được nghiên cứu. Nếu phát hiện một hợp chất làm tăng liên kết NUDT5–PPAT, cần tiếp tục kiểm chứng tác dụng đó có thực sự làm giảm hoạt tính PPAT và dòng tổng hợp purine mới hay không.
9. Astilbin và các đồng phân: Vai trò của cấu hình không gian trong tương tác enzyme
Astilbin, Neoastilbin, Isoastilbin và Neoisoastilbin là bốn đồng phân lập thể thuộc nhóm flavonoid glycoside. Chúng có cùng công thức phân tử nhưng khác nhau về cấu hình không gian tại những trung tâm bất đối xứng, dẫn đến sự khác biệt trong cách phân tử tiếp xúc với enzyme và những protein vận chuyển. Các nghiên cứu hóa thực vật về Smilax glabra đã xác nhận sự hiện diện của những đồng phân này, trong đó Astilbin thường là một thành phần flavonoid nổi bật. Tỷ lệ giữa các đồng phân có thể thay đổi theo nguồn nguyên liệu và phương pháp chế biến.
Đối với nghiên cứu sinh tổng hợp purine, giá trị của nhóm Astilbin không chỉ nằm ở hoạt tính sinh học đã được khảo sát trong những lĩnh vực khác mà còn ở khả năng sử dụng bốn đồng phân làm một hệ đối chiếu cấu trúc. Nếu các đồng phân biểu hiện mức độ tác động khác nhau lên PRPS1, PRPS3 hoặc PPAT, sự khác biệt này có thể cung cấp thông tin về yêu cầu cấu hình không gian của vị trí liên kết. Tương tự, nếu chỉ một đồng phân có khả năng ổn định phức hợp NUDT5–PPAT, kết quả đó sẽ gợi ý rằng vùng tương tác protein có tính chọn lọc lập thể rõ rệt.
Muốn trả lời câu hỏi này, cần khảo sát từng đồng phân riêng biệt, sử dụng cùng hệ thử nghiệm và điều kiện phản ứng. Không nên chỉ đánh giá một phân đoạn flavonoid tổng số rồi quy tác dụng cho Astilbin, bởi những đồng phân và thành phần khác có thể đóng góp vào kết quả quan sát. Hiện chưa có bằng chứng được xác minh cho thấy Astilbin hoặc ba đồng phân còn lại trực tiếp ức chế PRPS3, PRPS1, PPAT hay tăng cường tương tác NUDT5–PPAT.
Vì vậy, giá trị trước mắt của nhóm này là cung cấp những cấu trúc tự nhiên để nghiên cứu tính chọn lọc enzyme và tương quan cấu trúc – hoạt tính. Việc tìm được một đồng phân có hiệu quả rõ rệt sẽ tạo cơ sở để khảo sát sâu hơn về cơ chế liên kết và ảnh hưởng đến dòng sinh tổng hợp purine.
10. Hai hướng can thiệp từ thượng nguồn: Điều hòa gene và tăng cường cơ chế ức chế sinh lý
Từ những dữ liệu hiện có, có thể hình thành hai hướng nghiên cứu trực tiếp vào quá trình sinh tổng hợp purine mới. Hướng thứ nhất là giảm biểu hiện hoặc điều hòa hoạt tính những gene và enzyme nằm ở đầu con đường chuyển hóa, đặc biệt PRPS1L1, PRPS1 và PPAT. Hướng thứ hai là tăng cường tương tác giữa NUDT5 và PPAT, qua đó tận dụng cơ chế phản hồi âm của tế bào để hạn chế sự tổng hợp purine vượt nhu cầu.
Đối với hướng thứ nhất, giảm biểu hiện gene có thể được thực hiện bằng những cơ chế điều hòa phiên mã, hậu phiên mã hoặc giảm độ ổn định của RNA thông tin. Các hoạt chất thiên nhiên có thể ảnh hưởng đến một hoặc nhiều cơ chế này, nhưng tác dụng phải được xác định riêng trên từng gene mục tiêu. Một hợp chất làm giảm RNA thông tin chưa chắc làm giảm protein, và sự giảm protein cũng chưa chắc dẫn đến giảm đáng kể dòng chuyển hóa. Vì vậy, đánh giá hiệu quả phải kết hợp biểu hiện gene, lượng enzyme và tốc độ tổng hợp purine mới. Pallidifloside D hiện là ứng viên có bằng chứng gần nhất với hướng này, trong khi những hợp chất còn lại vẫn cần khảo sát thực nghiệm.
Một khả năng sâu hơn là tác động trực tiếp lên chức năng gene bằng các công nghệ làm giảm biểu hiện RNA hoặc ức chế phiên mã có định hướng. Những phương pháp này có giá trị đặc biệt trong nghiên cứu xác định chức năng, bởi chúng cho phép phân biệt phần đóng góp của từng gene vào dòng tổng hợp purine. Tuy nhiên, bất hoạt gene PRPS1L1, PRPS1 hay PPAT để điều trị bệnh là vấn đề khác với sử dụng công nghệ đó trong phòng thí nghiệm. Việc can thiệp gene trên người cần đánh giá nghiêm ngặt về tính chọn lọc, khả năng hồi phục, tác động ngoài mục tiêu và những hậu quả dài hạn đối với chuyển hóa nucleotide.
Đối với hướng thứ hai, nghiên cứu không nhằm làm giảm lượng PPAT được tạo thành mà tìm cách duy trì enzyme ở trạng thái hoạt tính thấp thông qua liên kết với NUDT5. Phát hiện về những phân tử chuyển hóa đóng vai trò chất kết dính giữa hai protein cung cấp một nguyên lý điều hòa mới. Nếu một hợp chất thiên nhiên có thể ổn định tương tác này, nó có thể tăng cường khả năng tự kìm hãm sinh tổng hợp purine của tế bào. Tuy nhiên, tính chất ấy phải được chứng minh bằng thực nghiệm liên kết protein và đo hoạt tính enzyme, không thể suy ra chỉ từ khả năng gắn với một protein riêng lẻ.
Hai hướng can thiệp có thể bổ trợ nhau. Một bên tác động đến lượng enzyme được tạo thành hoặc hoạt tính đầu nguồn; bên còn lại tác động đến trạng thái điều hòa của enzyme khi đã hiện diện trong tế bào. Vấn đề quyết định là phải xác định được mức độ giảm dòng tổng hợp purine thực tế và bảo đảm sự điều hòa không gây thiếu hụt nucleotide thiết yếu.
11. Làm thế nào chứng minh một hoạt chất thực sự chặn được sinh tổng hợp purine?
Trong nghiên cứu dược lý, việc đo nồng độ acid uric máu không đủ để chứng minh tác dụng tại đầu nguồn. Acid uric máu phản ánh kết quả đồng thời của sản xuất, chuyển hóa và đào thải, nên một hoạt chất làm giảm urate vẫn có thể hoàn toàn không tác động đến quá trình tổng hợp purine mới. Muốn xác định đúng cơ chế, cần đo trực tiếp dòng chuyển hóa từ những tiền chất ban đầu đến nucleotide purine được tạo thành.
Một phương pháp thích hợp là sử dụng các tiền chất được đánh dấu đồng vị bền, chẳng hạn glucose mang carbon-13 hoặc glutamine mang nitrogen-15, sau đó định lượng sự xuất hiện của đồng vị trong những nucleotide purine bằng sắc ký lỏng ghép khối phổ. Phương pháp này cho phép xác định phần nucleotide được tổng hợp mới, phân biệt với lượng nucleotide đã tồn tại hoặc được tạo ra từ con đường tái sử dụng. Đồng thời, cần đo nồng độ phosphoribosyl pyrophosphate, inosine monophosphate, adenosine monophosphate và guanosine monophosphate để đánh giá toàn bộ dòng chuyển hóa.
Đối với nghiên cứu PRPS3, cần sử dụng mô hình tế bào có biểu hiện gene PRPS1L1 phù hợp, đồng thời so sánh với mô hình giảm hoặc mất biểu hiện gene để xác định phần đóng góp thực sự của enzyme. Đối với PRPS1 và PPAT, cần khảo sát hoạt tính riêng của từng enzyme trong điều kiện kiểm soát nồng độ cơ chất và các yếu tố điều hòa. Với phức hợp NUDT5–PPAT, phải đo khả năng tăng liên kết giữa hai protein, sự thay đổi hoạt tính PPAT và kết quả chuyển hóa trong tế bào có hoặc không có NUDT5.
Một hoạt chất chỉ được xem là có bằng chứng tác động lên sinh tổng hợp purine khi sự thay đổi của enzyme đi kèm thay đổi dòng chuyển hóa thực tế. Muốn tiến xa hơn đến nghiên cứu gout, còn phải chứng minh rằng sự giảm tổng hợp purine dẫn đến giảm lượng urate được sản xuất và có hiệu quả đối với những biểu hiện bệnh lý liên quan đến tích lũy tinh thể urate.
Cần đặc biệt chú ý đến khả năng bù trừ của tế bào. Khi quá trình tổng hợp purine mới bị hạn chế, tế bào có thể tăng sử dụng con đường tái sử dụng nucleotide. Đây là cơ chế sinh lý quan trọng giúp duy trì nguồn nucleotide cần thiết. Một chất điều hòa tốt cần giảm dòng tổng hợp dư thừa nhưng vẫn cho phép tế bào duy trì hoạt động bình thường, thay vì gây thiếu hụt nucleotide trên diện rộng.
12. Từ nghiên cứu chất thiên nhiên đến triển vọng kiểm soát bệnh gout từ căn nguyên chuyển hóa
Trong nhiều năm, nghiên cứu và điều trị gout đã đạt được những thành tựu quan trọng thông qua các thuốc làm giảm sản xuất acid uric hoặc tăng đào thải urate. Allopurinol là một trong những thuốc được sử dụng rộng rãi và có bằng chứng lâm sàng rõ ràng về khả năng hạ urate, phòng ngừa cơn gout tái phát khi duy trì nồng độ urate đạt mục tiêu. Các nghiên cứu dược liệu cũng đã khảo sát nhiều hợp chất có khả năng tác động vào những khâu cuối của chuyển hóa purine. Tuy nhiên, những thành tựu ấy không làm mất đi giá trị của việc tìm hiểu các cơ chế điều hòa đầu nguồn, đặc biệt trong những trường hợp có tăng sinh tổng hợp purine nội sinh.
Nếu một bệnh nhân tăng sản xuất acid uric do rối loạn hoạt tính PRPS1, việc nghiên cứu enzyme này có thể giúp hiểu rõ hơn căn nguyên chuyển hóa. Nếu PRPS3 tại tinh hoàn được chứng minh đóng góp đáng kể vào lượng urate nội sinh, sự điều hòa chọn lọc enzyme có thể tạo ra một hướng nghiên cứu đặc hiệu mô. Nếu PPAT bị hoạt hóa quá mức hoặc cơ chế phản hồi NUDT5–PPAT suy giảm, việc khôi phục sự điều hòa của hệ thống có thể giúp hạn chế dòng tổng hợp purine mới. Đây là những tình huống nghiên cứu khác nhau, nhưng cùng hướng đến việc kiểm soát quá trình hình thành purine trước khi nucleotide được tạo thành và bị thoái hóa.
Trong nhóm 11 hoạt chất thiên nhiên được lựa chọn, Pallidifloside D có cơ sở thực nghiệm gần nhất với mục tiêu điều hòa biểu hiện enzyme đầu nguồn. Oxyresveratrol, Mulberroside A, Morin, Moracin M, Kuwanon G, Mulberrofuran G cùng bốn đồng phân Astilbin cung cấp những khung cấu trúc hóa học khác nhau để nghiên cứu khả năng tương tác với PRPS và phức hợp NUDT5–PPAT. Việc lựa chọn các hợp chất này tạo ra một thư viện nghiên cứu tương đối tập trung, vừa có chất mang tín hiệu thực nghiệm ban đầu, vừa có những nhóm cấu trúc phù hợp cho khảo sát tương quan cấu trúc – hoạt tính.
Dù vậy, chưa thể xác định sự phối hợp các chất trên sẽ tạo tác dụng hiệp đồng hoặc mang lại hiệu quả điều trị gout. Tác dụng của từng chất cần được chứng minh riêng trước khi nghiên cứu phối hợp. Ngoài hoạt tính phân tử, cần đánh giá khả năng hấp thu, nồng độ đạt được tại mô đích, chuyển hóa, đào thải và độc tính. Đặc biệt, với những hợp chất hướng đến PRPS3, phải đánh giá ảnh hưởng đến chức năng tinh hoàn và hoạt động sinh sản; với những hợp chất tác động lên PRPS1 hoặc PPAT, cần kiểm soát nguy cơ ảnh hưởng đến hệ thống tổng hợp nucleotide thiết yếu của toàn cơ thể.
Một hướng nghiên cứu mới chỉ thực sự có giá trị điều trị khi tác động sinh hóa được chuyển thành lợi ích lâm sàng. Giảm biểu hiện gene, giảm hoạt tính enzyme và giảm tổng hợp purine là những kết quả quan trọng, nhưng vẫn chưa tương đương với việc giảm acid uric máu, hạn chế hình thành tinh thể hoặc phòng ngừa cơn gout tái phát. Các bước kiểm chứng ấy phải được thực hiện liên tục và có hệ thống.
13. Kết luận: Kiểm soát sinh tổng hợp purine từ thượng nguồn là một hướng nghiên cứu đáng phát triển
Từ những dữ liệu sinh hóa, di truyền và dược lý phân tử hiện có, có thể xác định ba vị trí điều hòa quan trọng của quá trình sinh tổng hợp purine nội sinh: PRPS1 và PRPS3 tham gia hình thành phosphoribosyl pyrophosphate, trong khi PPAT xúc tác bước cam kết đầu tiên đưa nguyên liệu vào tổng hợp purine mới. PRPS1 đã có bằng chứng trực tiếp liên quan đến bệnh gout khi xảy ra đột biến tăng chức năng. PRPS3 có biểu hiện đặc hiệu tinh hoàn và đặt ra giả thuyết về sự liên hệ giữa hoạt động sinh sản nam giới với chuyển hóa purine, nhưng chưa được chứng minh là nguyên nhân tạo ra sự khác biệt nguy cơ gout giữa hai giới. PPAT là đích điều hòa quan trọng bởi nó quyết định một bước then chốt trong dòng tổng hợp purine mới.
Phát hiện về tương tác NUDT5–PPAT năm 2025 và cơ chế các nucleotide purine đóng vai trò chất kết dính phân tử năm 2026 đã bổ sung một tầng điều hòa đáng chú ý. Tế bào có khả năng sử dụng chính những sản phẩm purine đã hình thành để kìm hãm hoạt động của enzyme đầu nguồn, qua đó tránh tổng hợp nucleotide vượt nhu cầu. Cơ chế này mở ra triển vọng tìm những hoạt chất thiên nhiên có khả năng tăng cường sự liên kết giữa NUDT5 và PPAT, thay vì chỉ tìm chất ức chế trực tiếp enzyme.
Đối với các hoạt chất thiên nhiên, Pallidifloside D hiện có bằng chứng thực nghiệm liên quan đến giảm biểu hiện hệ enzyme tổng hợp purine khi phối hợp trong mô hình nghiên cứu. Mười hoạt chất còn lại gồm Oxyresveratrol, Mulberroside A, Morin, Moracin M, Kuwanon G, Mulberrofuran G, Astilbin, Neoastilbin, Isoastilbin và Neoisoastilbin là những đối tượng cần tiếp tục khảo sát về khả năng điều hòa biểu hiện gene, hoạt tính PRPS và tương tác NUDT5–PPAT.
Từ đó, có thể xác định hai chiến lược nghiên cứu: điều hòa biểu hiện các gene PRPS1L1, PRPS1 và PPAT nhằm hạn chế sự tổng hợp purine quá mức; đồng thời tìm hoạt chất có khả năng tăng cường liên kết NUDT5–PPAT để phát huy cơ chế ức chế phản hồi sinh lý của tế bào. Hai chiến lược này hướng đến kiểm soát dòng chuyển hóa từ đầu nguồn, nhưng việc chuyển chúng thành phương pháp điều trị gout vẫn đòi hỏi bằng chứng về giảm sản xuất urate, hiệu quả phòng ngừa cơn gout và an toàn lâu dài.
Trong điều trị hiện nay, duy trì urate máu dưới ngưỡng mục tiêu vẫn là chiến lược đã được chứng minh giúp phòng ngừa tái phát và tạo điều kiện hòa tan dần tinh thể urate. Hướng nghiên cứu thượng nguồn có thể bổ sung những đích phân tử mới, đặc biệt đối với các rối loạn tăng sinh tổng hợp purine, nhưng chưa có bằng chứng để khẳng định phương pháp này sẽ kiểm soát triệt để gout ở mọi bệnh nhân.
Điều đáng nghiên cứu không chỉ là ngăn acid uric được tạo thành, mà còn là nhận diện những điều kiện khiến tế bào tổng hợp purine vượt nhu cầu và khôi phục cơ chế tự điều hòa của nó. Một khi hiểu rõ sự vận hành của hệ enzyme đầu nguồn, chúng ta có thể tìm được những phương pháp kiểm soát chuyển hóa chính xác hơn, hạn chế sự hình thành nguồn purine dư thừa mà vẫn bảo tồn những chức năng thiết yếu của cơ thể. Thời điểm hiện tại viện Y học bản địa Việt Nam đã có nhưng bước đi dài rất khả quan về vấn đề nêu trên;
Mọi phản biện khoa học: xin gửi về Bác sĩ Hoàng Sầm zalo 0977356913
Tài liệu tham khảo
- GBD 2021 Gout Collaborators. Global, regional, and national burden of gout, 1990–2020, and projections to 2050: a systematic analysis of the Global Burden of Disease Study 2021. The Lancet Rheumatology. 2024. PMID: 38996590.
- de Brouwer APM, Christodoulou J. Phosphoribosylpyrophosphate synthetase superactivity. GeneReviews. NCBI Bookshelf.
- Wang Z, Lee S, Oliver D, et al. Prps1l1, a testis-specific gene, is dispensable for mouse spermatogenesis. Molecular Reproduction and Development. 2018;85(10):802–804. DOI: 10.1002/mrd.23053.
- Li HG, Hou PY, Zhang X, et al. Hypouricemic effect of allopurinol are improved by Pallidifloside D based on the uric acid metabolism enzymes PRPS, HGPRT and PRPPAT. Fitoterapia. 2016;113:1–5. DOI: 10.1016/j.fitote.2016.06.015.
- Wu Z, Nguyen PT, Sondhi V, et al. NUDT5 regulates purine metabolism and thiopurine sensitivity by interacting with PPAT. Science. 2025;390(6778):1134–1142. DOI: 10.1126/science.adx9717.
- Witus SR, Kober MM, Roh H, et al. Metabolite glues as a means of purine sensing and chemotherapeutic response. Nature. 2026;655:1300–1308. DOI: 10.1038/s41586-026-10790-3.
- Uridine-sensitized screening identifies demethoxy-coenzyme Q and NUDT5 as regulators of nucleotide synthesis. Nature Metabolism. 2025. DOI: 10.1038/s42255-025-01419-2.
- Smilax glabra Roxb.: A Review of Its Traditional Usages, Phytochemical Constituents, Pharmacological Properties, and Clinical Applications. 2022. PubMed Central: PMC9579009.
- Bùi Thị Minh Nguyệt, Trần Huỳnh Nguyên Khanh. The isolated compounds from the twigs of Morus alba L. in Dong Thap. Vietnam Journal of Science and Technology. 2016;54(4):509. DOI: 10.15625/0866-708X/54/4/7357.
- Morus alba: a comprehensive phytochemical and pharmacological review. Naunyn-Schmiedeberg’s Archives of Pharmacology. 2023. DOI: 10.1007/s00210-023-02434-4.
- FitzGerald JD, Dalbeth N, Mikuls T, et al. 2020 American College of Rheumatology Guideline for the Management of Gout. Arthritis Care & Research. 2020;72(6):744–760. PMID: 32391934.
PHẦN DÀNH CHO QUẢNG CÁO